一个RNA分子开启了一切?
每个活细胞都用同一台机器把遗传信息转化为蛋白质:核糖体。它需要100多种转运RNA,以及几种给转运RNA装载氨基酸的酶协同工作。这样一个环环相扣的系统是怎么出现的?核糖体需要蛋白质才能高效运转——而蛋白质又需要核糖体才能被制造出来。
经典的设想各自都会碰到这一难题的某种版本。在“RNA世界”中,RNA先出现;在“蛋白质世界”中,蛋白质先出现;在协同进化模型中,两者共同发展。法国蒙彼利埃大学和法国国家科学研究中心(CNRS)的Alice Cleynen,以及西澳大利亚大学的Archa Fox和Nikolay Shirokikh认为,这些设想都留下了一个缺口:它们无法解释,在基因与其效应在物理上联系起来之前,有用的特征是如何既被产生、又被选择出来的。
一个分子,两份工作
他们提出的是核糖复制体(riboreplisome):一种古老的RNA分子,既能自我复制,又承担了蛋白质合成的最初步骤。按照这一观点,复制和翻译最初是同一个分子的两种功能。核糖体RNA、转运RNA和信使RNA都由它演化而来。
作者援引了近年的实验。他们指出,一个仅有45个核苷酸长、从随机序列中进化而来的聚合酶核酶,能够合成自己的互补链和自身的拷贝。两个亚基被连成一条RNA链的核糖体仍然能够工作。来自核糖体催化核心、长约67个核苷酸的片段能够形成肽键。还有研究表明,RNA能在中性pH的水中把氨基酸连接到自己身上。
通往细胞的十二步
论文列出了一条12步路径:
- 第1—2步,仅有的两个“非达尔文”步骤:短RNA连接成一个能够复制的分子;随后碱基配对把复制限制在“自身”。从这里开始,自然选择不间断地发挥作用。
- 第3步:复制者把一个氨基酸装载到自己的末端——核糖复制体由此诞生,成为“一个完整的遗传系统”。
- 第4—8步:它专门化于某些氨基酸,合成短肽,复制自身;多余的拷贝变成原始转运RNA,编码库不断扩大。
- 第9步:一个可移动的片段起到信使RNA的作用。
- 第10—12步:被包裹在膜或液滴中,使产物保持在近旁;最后,原始核糖体分裂成两个亚基,原来的分子变成一个RNA基因组。
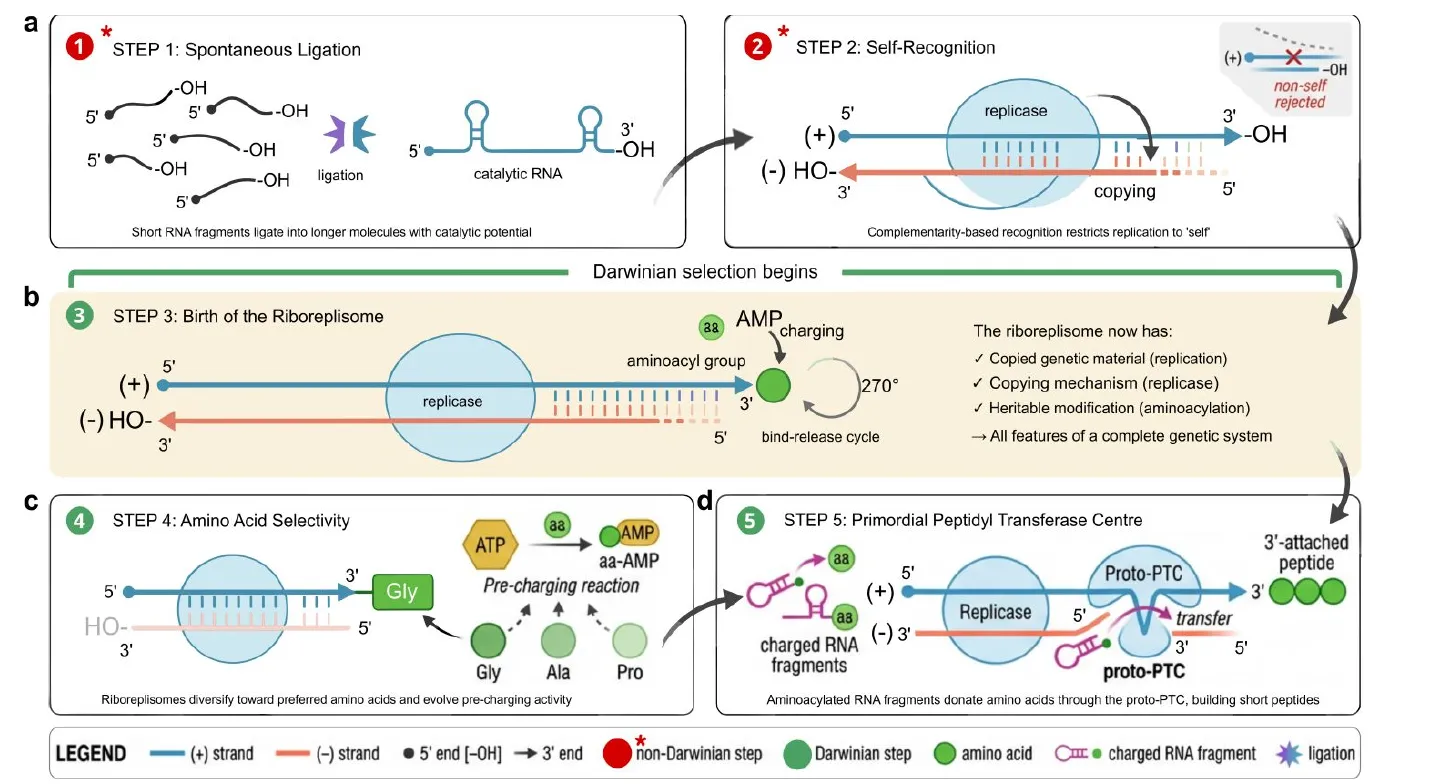
所提出路径的第1至5步。红色星号标出两个非达尔文步骤;达尔文选择从第2步之后开始。——图2,Cleynen、Fox & Shirokikh(2026),arXiv:2609.30816。
三个模型,一个结论
作者把他们的单一分子与一种“RNA汤”进行了比较,在后者中,各自独立的分子必须相互合作。
- 适应度地形:各步骤之间相互作用较少时,地形约有11个局部峰;在“汤”那种强烈相互依赖的情况下,约有155个。进化在“汤”中被困住的情形要频繁得多。
- 信息:在165比特的功能信息中,有65比特(39%)必须在前两步中偶然产生。这两步占据了99.99%以上的等待时间;其余十步很快接踵而至。
- 种群模拟:在500代中,核糖复制体的适应度从1.0升至2.61,而“汤”的适应度降至0.46——相差5.69倍。罪魁祸首主要是扩散:有用的产物漂离了制造它们的基因。清除“作弊”分子几乎无济于事。
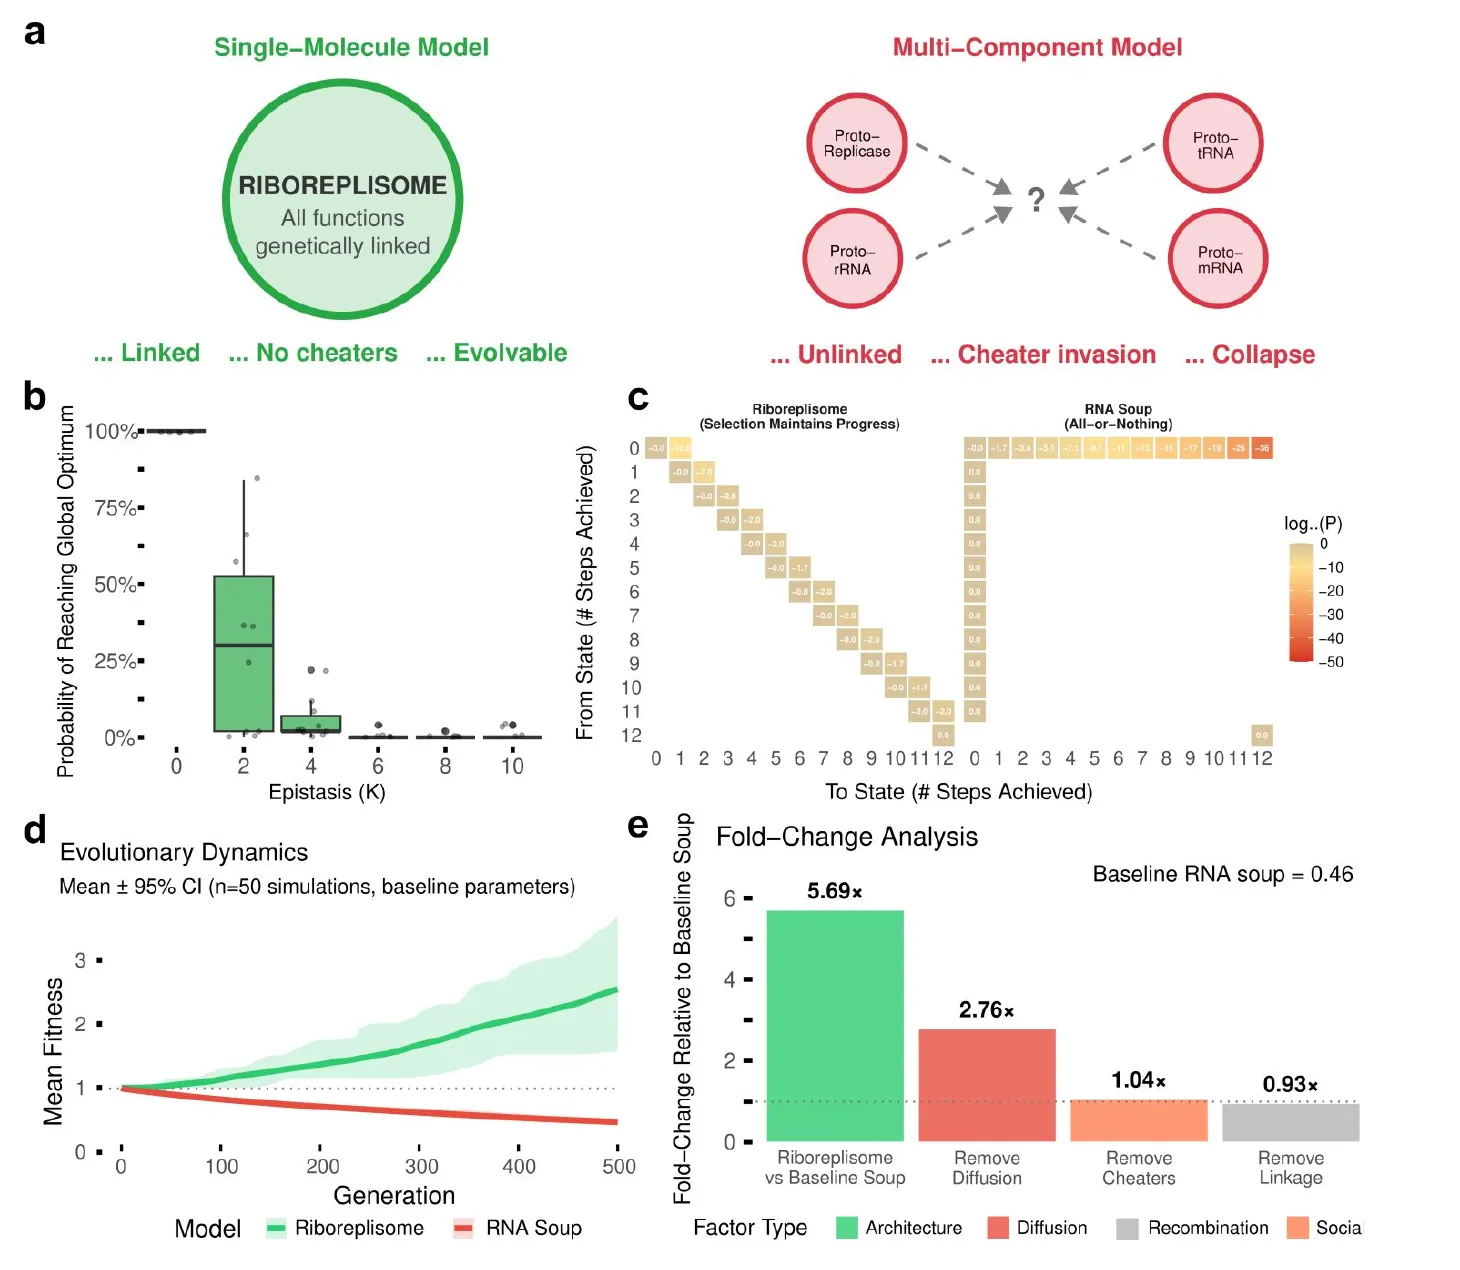
相连的单一分子与相互合作的RNA“汤”对比:核糖复制体的适应度上升,而“汤”的适应度下降;产物的扩散是最大的不利因素。——图4,Cleynen、Fox & Shirokikh(2026),arXiv:2609.30816。
一个等待检验的理论
这是一个假说,而不是一项发现:论文没有报告任何新实验,其模型依赖于估计的参数。文中有些数字前后不一致——例如,达到最优解的概率在一处给出的是5%,而在图中约为30%。作者提出了四种检验方法:在实验室中进化出最小的核糖复制体,在核糖体RNA中寻找它的痕迹,检验单分子翻译能否抵御“作弊者”,以及重建所预言的中间体。他们写道,最初的核糖复制体可能早已消失,但它的遗迹或许仍保留在每个细胞的RNA之中。