جزيء RNA واحد بدأ كل شيء؟
تحوّل كل خلية حية المعلومات الوراثية إلى بروتينات بالآلة نفسها: الريبوسوم. وهو يعمل مع أكثر من 100 من جزيئات RNA الناقل وعدة إنزيمات تحمّلها بالأحماض الأمينية. فكيف أمكن لنظام متشابك إلى هذا الحد أن يظهر؟ يحتاج الريبوسوم إلى بروتينات ليعمل بكفاءة، لكن البروتينات تحتاج إلى الريبوسوم لكي تُصنع.
تصطدم السيناريوهات الكلاسيكية كلٌّ منها بصيغة من هذا اللغز. ففي «عالم RNA» جاء RNA أولًا؛ وفي «عالم البروتين» جاءت البروتينات؛ وفي نماذج التطور المشترك نما الاثنان معًا. وبحسب أليس كلينن من جامعة مونبلييه والمركز الوطني الفرنسي للبحث العلمي (CNRS)، وأرتشا فوكس ونيكولاي شيروكيخ من جامعة غرب أستراليا، تترك هذه السيناريوهات كلها فجوة: فهي لا تفسر كيف أمكن للسمات المفيدة أن تُنتَج وتُنتقى معًا قبل أن تُربط الجينات وآثارها ربطًا ماديًا.
جزيء واحد يؤدي عملين
اقتراحهم هو الريبوريبليسوم (riboreplisome): جزيء RNA قديم كان ينسخ نفسه ويؤدي أيضًا الخطوات الأولى من تخليق البروتين. ووفق هذه الرؤية، بدأ النسخ والترجمة بوصفهما وظيفتين للجزيء نفسه. وتنحدر منه جزيئات RNA الريبوسومي والناقل والمرسال جميعًا.
يستند المؤلفون إلى تجارب حديثة. فهم يشيرون إلى أن ريبوزيمًا بوليميرازيًا طوله 45 نيوكليوتيدًا فقط، جرى تطويره من تسلسلات عشوائية، يستطيع صنع سلسلته المكمّلة ونسخة من نفسه. والريبوسومات التي رُبط نصفاها في سلسلة RNA واحدة لا تزال تعمل. وشظايا يبلغ طولها نحو 67 نيوكليوتيدًا من القلب التحفيزي للريبوسوم تستطيع تكوين روابط ببتيدية. وقد ثبت أن RNA يستطيع ربط أحماض أمينية بنفسه في الماء، عند درجة حموضة متعادلة.
اثنتا عشرة خطوة نحو خلية
تعرض الورقة مسارًا من 12 خطوة:
- الخطوتان 1–2، وهما الوحيدتان «غير الداروينيتين»: تتحد جزيئات RNA قصيرة في جزيء قادر على النسخ؛ ثم يقصر التزاوجُ النسخَ على «الذات». ومن هنا يعمل الانتقاء الطبيعي دون انقطاع.
- الخطوة 3: يحمّل الناسخ حمضًا أمينيًا على طرفه الخاص، فيولد الريبوريبليسوم، وقد صار الآن «نظامًا وراثيًا كاملًا».
- الخطوات 4–8: يتخصص في أحماض أمينية معينة، ويصنع ببتيدات قصيرة، ويضاعف نفسه؛ فتصبح النسخ الزائدة جزيئات RNA ناقل بدائية، ويتسع مخزون الترميز.
- الخطوة 9: يعمل مقطع متحرك عمل RNA المرسال.
- الخطوات 10–12: يُبقي الاحتواء داخل غشاء أو قطيرة النواتجَ قريبة؛ وأخيرًا ينقسم الريبوسوم البدائي إلى وحدتيه الفرعيتين، ويصبح الجزيء الأصلي جينوم RNA.
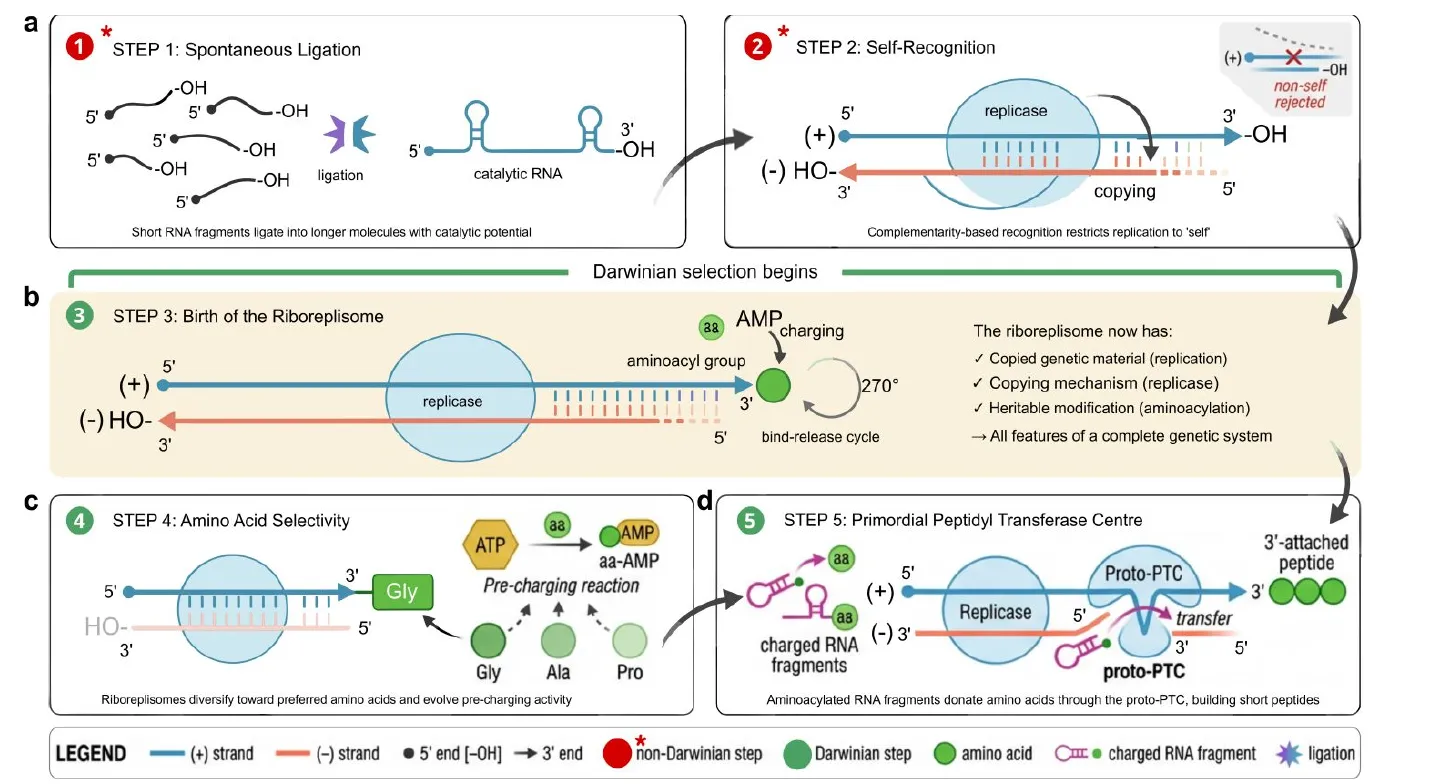
الخطوات من 1 إلى 5 من المسار المقترح. تشير النجيمات الحمراء إلى الخطوتين غير الداروينيتين؛ ويبدأ الانتقاء الدارويني بعد الخطوة 2. — الشكل 2، Cleynen, Fox & Shirokikh (2026)، arXiv:2609.30816.
ثلاثة نماذج واستنتاج واحد
يقارن المؤلفون جزيئهم الواحد بـ«حساء RNA» يتعين فيه على جزيئات منفصلة أن تتعاون.
- مشاهد الصلاحية (fitness landscapes): مع قلة التفاعلات بين الخطوات، يضم المشهد نحو 11 قمة محلية؛ ومع الترابط القوي في الحساء، نحو 155. ويعلق التطور في الحساء مرات أكثر بكثير.
- المعلومات: من 165 بتًا من المعلومات الوظيفية، يجب أن ينشأ 65 (39%) بالمصادفة في الخطوتين الأوليين. وتستأثر هاتان الخطوتان بأكثر من 99.99% من زمن الانتظار؛ وتتبعهما الخطوات العشر الأخرى بسرعة.
- محاكاة الجماعات: على مدى 500 جيل، ترتفع صلاحية الريبوريبليسوم من 1.0 إلى 2.61، بينما تنخفض صلاحية الحساء إلى 0.46، أي فارق قدره 5.69 ضعفًا. والمتهم الرئيسي هو الانتشار: تبتعد النواتج المفيدة عن الجينات التي صنعتها. ولا يكاد استبعاد الجزيئات الغشاشة يفيد شيئًا.
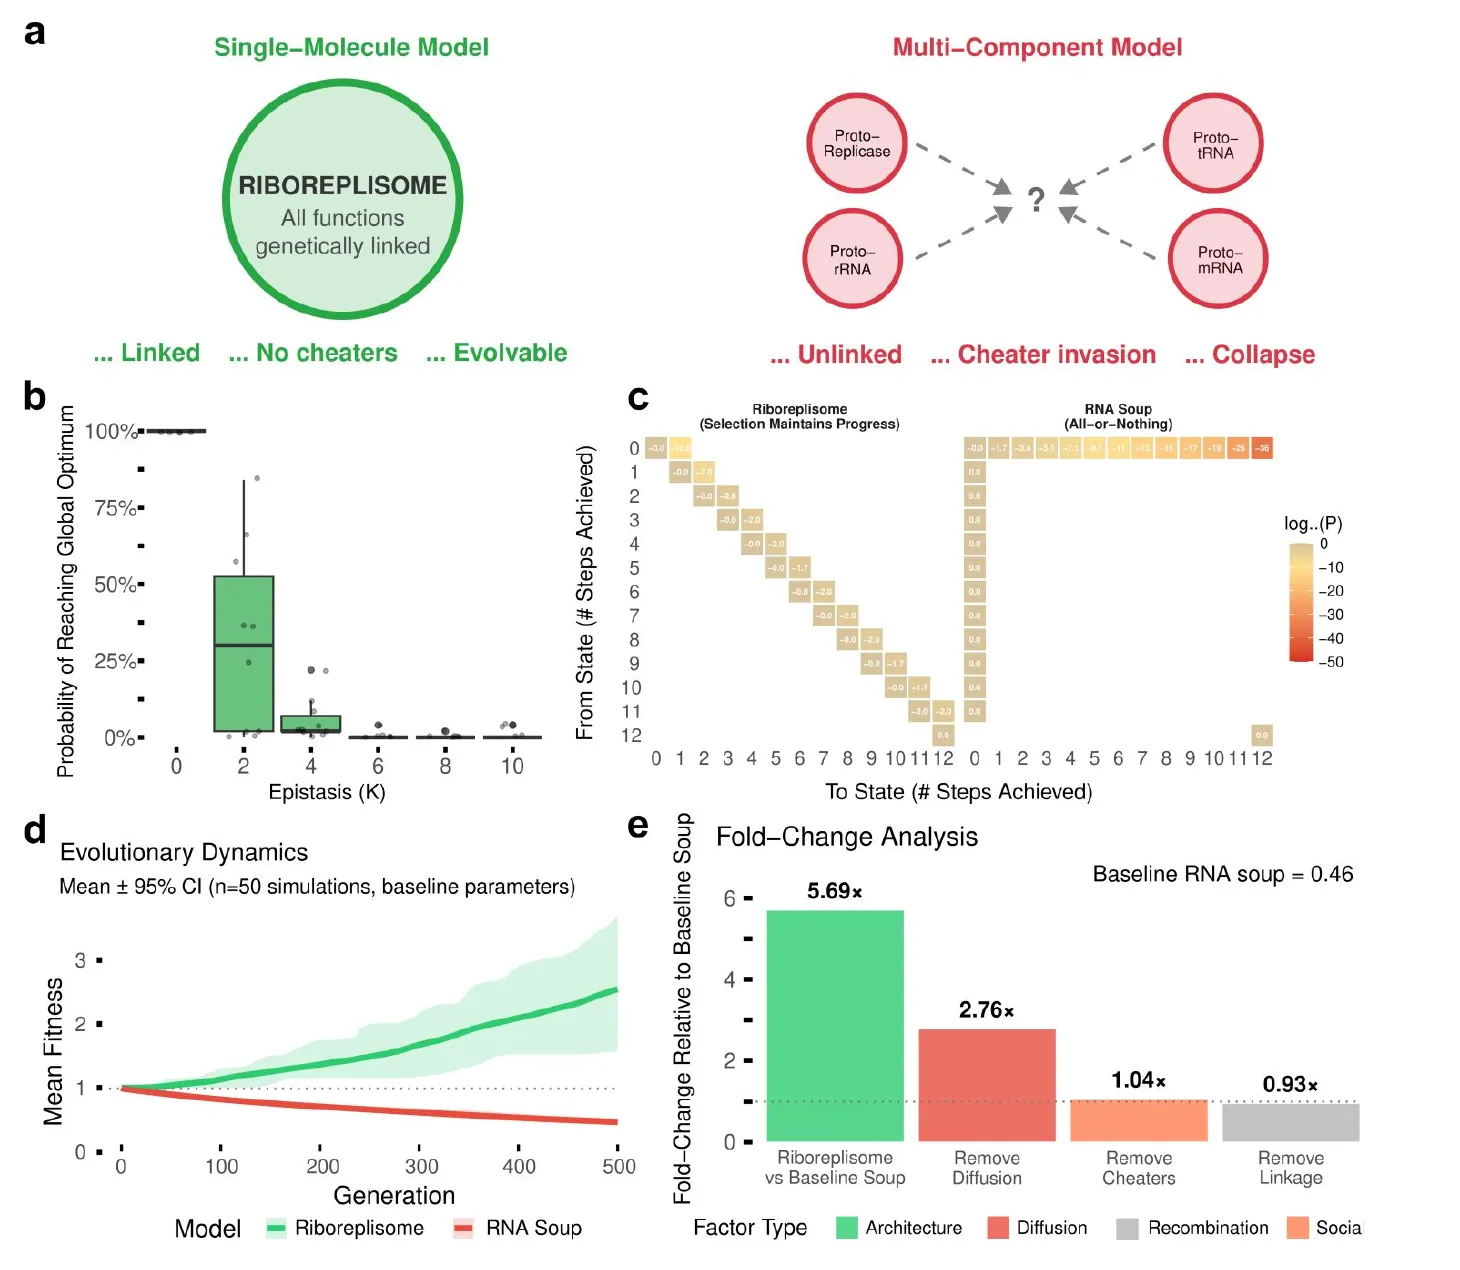
جزيء واحد مترابط مقابل حساء من جزيئات RNA متعاونة: ترتفع صلاحية الريبوريبليسوم بينما تنخفض صلاحية الحساء؛ وانتشار النواتج هو أكبر عائق. — الشكل 4، Cleynen, Fox & Shirokikh (2026)، arXiv:2609.30816.
نظرية تنتظر اختباراتها
هذه فرضية، لا اكتشاف: لا تعرض الورقة أي تجربة جديدة، وتستند نماذجها إلى معاملات مقدّرة. وبعض الأرقام غير متسق عبر النص؛ فمثلًا يُذكر احتمال بلوغ أفضل حل على أنه 5% في موضع، ونحو 30% في الأشكال. ويقترح المؤلفون أربع طرق لاختبارها: تطوير ريبوريبليسومات دنيا في المختبر، والبحث عن آثارها في RNA الريبوسومي، والتحقق من أن الترجمة بجزيء واحد تقاوم الغشاشين، وإعادة بناء المراحل الوسيطة المتوقعة. ويكتبون أن الريبوريبليسوم الأصلي ضاع على الأرجح، لكن بقاياه قد تكون باقية في RNA كل خلية.