یک مولکول RNA برای آغاز همهچیز؟
هر یاختهٔ زنده اطلاعات ژنتیکی را با یک دستگاه یکسان به پروتئین تبدیل میکند: ریبوزوم. ریبوزوم با بیش از 100 RNA ناقل و چندین آنزیم که آنها را با آمینواسید بار میکنند کار میکند. چنین سامانهٔ درهمتنیدهای چگونه میتوانست پدید آید؟ ریبوزوم برای کار کارآمد به پروتئین نیاز دارد، اما پروتئینها برای ساخته شدن به ریبوزوم نیاز دارند.
سناریوهای کلاسیک هر یک به نسخهای از این معما برمیخورند. در «جهان RNA»، نخست RNA آمد؛ در «جهان پروتئین»، پروتئینها؛ در مدلهای همتکاملی، هر دو با هم رشد کردند. به گفتهٔ Alice Cleynen از دانشگاه مونپلیه و CNRS، و Archa Fox و Nikolay Shirokikh از دانشگاه استرالیای غربی، همهٔ آنها شکافی باقی میگذارند: توضیح نمیدهند که ویژگیهای سودمند چگونه میتوانستند هم تولید و هم انتخاب شوند، پیش از آنکه ژنها و اثرهایشان بهطور فیزیکی به هم پیوند بخورند.
یک مولکول با دو کار
پیشنهاد آنها ریبورپلیزوم (riboreplisome) است: مولکول RNA باستانیای که هم از خود نسخه برمیداشت و هم نخستین گامهای سنتز پروتئین را انجام میداد. در این دیدگاه، همانندسازی و ترجمه بهصورت دو کارکرد یک مولکول آغاز شدند. RNAهای ریبوزومی، ناقل و پیامرسان همگی از آن مشتق میشدند.
نویسندگان به آزمایشهای اخیر تکیه میکنند. به گفتهٔ آنها، یک ریبوزیم پلیمراز تنها به طول 45 نوکلئوتید که از توالیهای تصادفی تکامل یافته، میتواند رشتهٔ مکمل خود و نسخهای از خودش را بسازد. ریبوزومهایی که دو نیمهشان در یک زنجیرهٔ واحد RNA به هم بسته شدهاند همچنان کار میکنند. قطعههایی حدود 67 نوکلئوتیدی از قلب کاتالیزوری ریبوزوم میتوانند پیوند پپتیدی بسازند. و نشان داده شده که RNA میتواند در آب و در pH خنثی آمینواسیدها را به خود بچسباند.
دوازده گام تا یک یاخته
مقاله مسیری 12گامی ترسیم میکند:
- گامهای 1 تا 2، تنها گامهای «غیرداروینی»: RNAهای کوتاه به هم میپیوندند و مولکولی میسازند که میتواند نسخهبرداری کند؛ سپس جفتشدن، نسخهبرداری را به «خود» محدود میکند. از اینجا به بعد، انتخاب طبیعی بیوقفه کار میکند.
- گام 3: نسخهبردار یک آمینواسید را روی انتهای خودش بار میکند؛ تولد ریبورپلیزوم، که اکنون «یک سامانهٔ ژنتیکی کامل» است.
- گامهای 4 تا 8: در آمینواسیدهای خاصی تخصص مییابد، پپتیدهای کوتاه میسازد، خود را دوتا میکند؛ نسخههای اضافی به RNAهای ناقلِ نخستین تبدیل میشوند و گنجینهٔ رمزگذاری گسترش مییابد.
- گام 9: بخشی جابهجاشدنی مانند یک RNA پیامرسان عمل میکند.
- گامهای 10 تا 12: محصور شدن در یک غشا یا قطره فراوردهها را نزدیک نگه میدارد؛ سرانجام ریبوزومِ نخستین به دو زیرواحدش تقسیم میشود و مولکول اصلی به یک ژنوم RNA تبدیل میگردد.
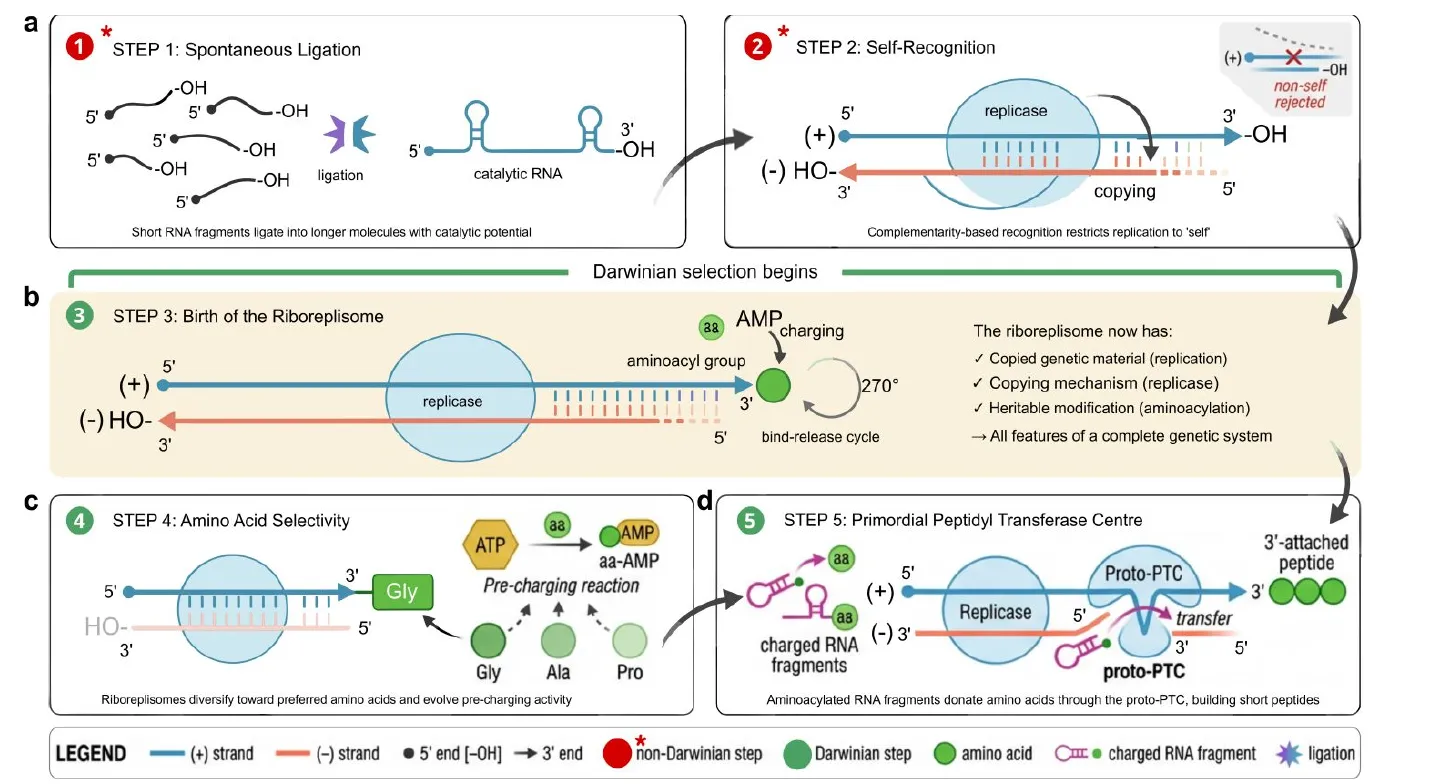
گامهای 1 تا 5 از مسیر پیشنهادی. ستارههای قرمز دو گام غیرداروینی را نشان میدهند؛ انتخاب داروینی پس از گام 2 آغاز میشود. — شکل 2، Cleynen، Fox و Shirokikh (2026)، arXiv:2609.30816.
سه مدل، یک نتیجه
نویسندگان مولکول واحد خود را با یک «سوپ RNA» مقایسه میکنند که در آن مولکولهای جداگانه باید با هم همکاری کنند.
- چشماندازهای شایستگی: با برهمکنشهای اندک میان گامها، چشمانداز حدود 11 قلهٔ محلی دارد؛ با وابستگی متقابل شدید یک سوپ، حدود 155. تکامل در سوپ بسیار بیشتر به دام میافتد.
- اطلاعات: از 165 بیت اطلاعات کارکردی، 65 بیت (39 درصد) باید در دو گام نخست بهتصادف پدید آید. این دو گام بیش از 99.99 درصد زمان انتظار را در بر میگیرند؛ ده گام دیگر بهسرعت در پی میآیند.
- شبیهسازیهای جمعیت: در طول 500 نسل، شایستگی ریبورپلیزوم از 1.0 به 2.61 میرسد، در حالی که شایستگی سوپ به 0.46 میافتد؛ اختلافی 5.69 برابری. مقصر اصلی پخش (diffusion) است: فراوردههای سودمند از ژنهایی که آنها را ساختهاند دور میشوند. حذف مولکولهای متقلب بهزحمت کمکی میکند.
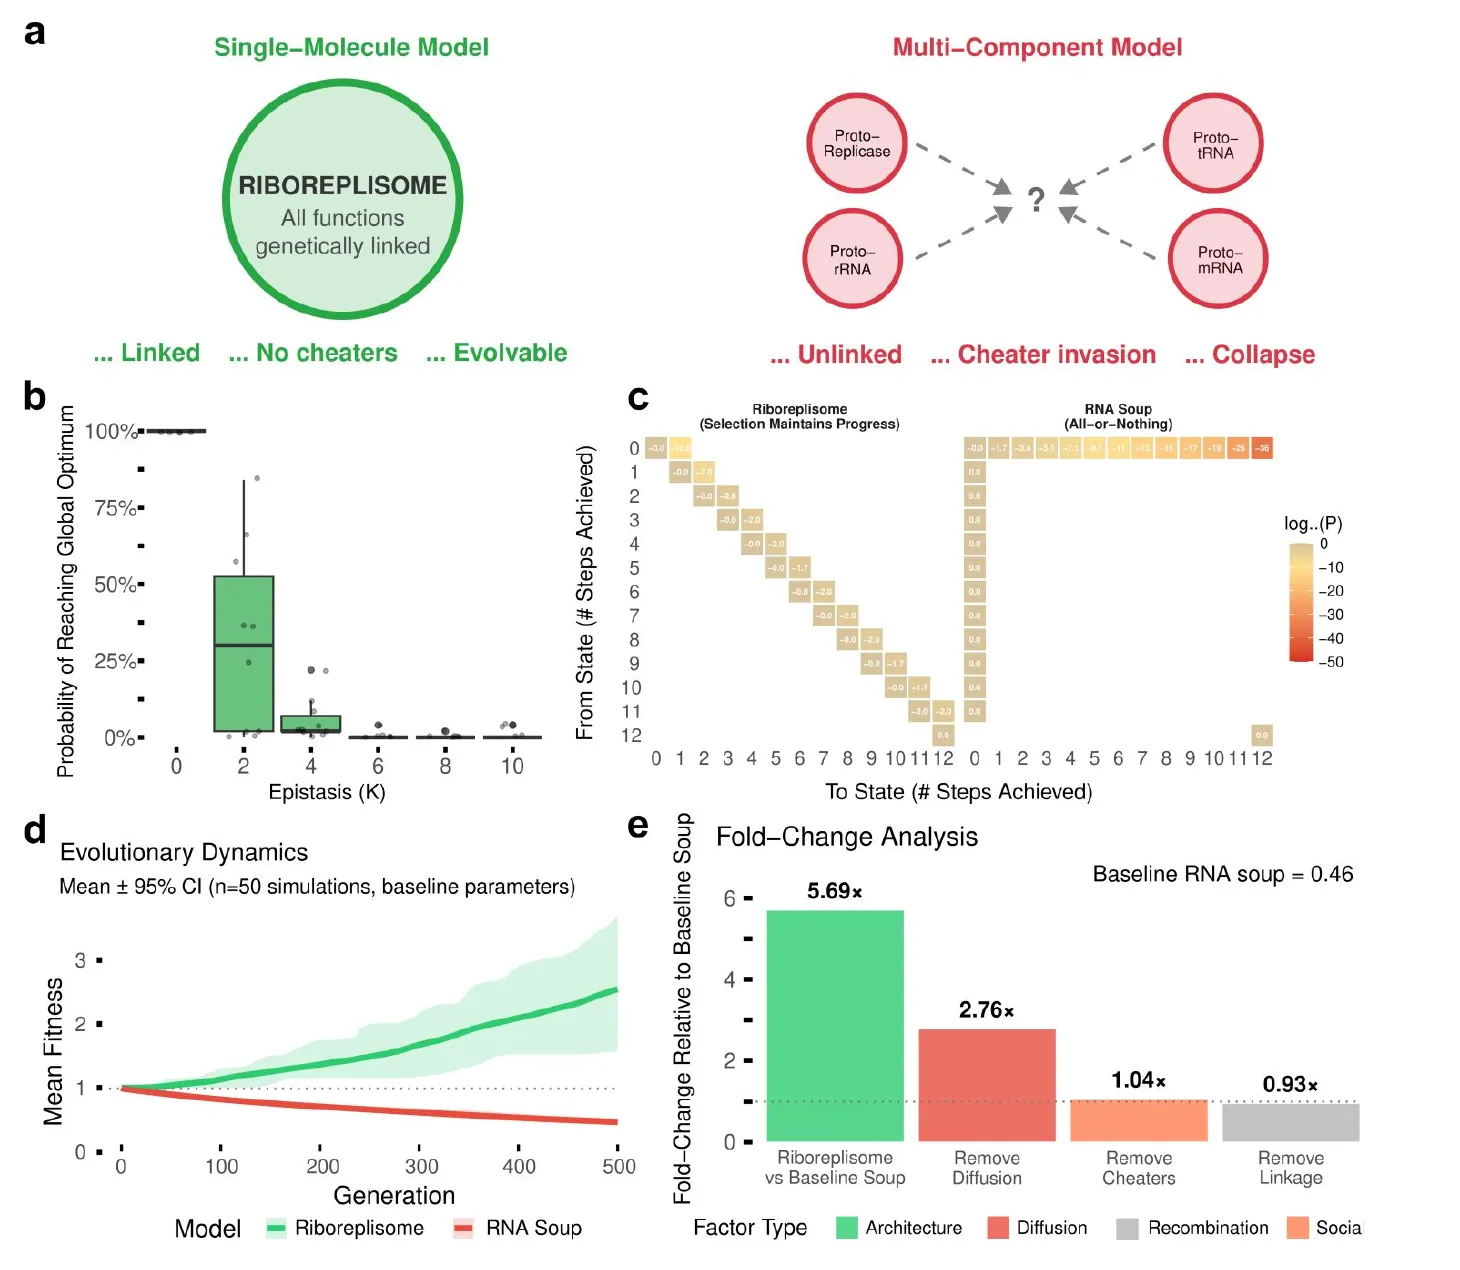
یک مولکول پیوستهٔ واحد در برابر سوپی از RNAهای همکار: شایستگی ریبورپلیزوم بالا میرود در حالی که شایستگی سوپ کاهش مییابد؛ پخش فراوردهها بزرگترین مانع است. — شکل 4، Cleynen، Fox و Shirokikh (2026)، arXiv:2609.30816.
نظریهای در انتظار آزمون
این یک فرضیه است، نه یک کشف: مقاله هیچ آزمایش تازهای گزارش نمیکند و مدلهایش بر پارامترهای برآوردی تکیه دارند. برخی ارقام در متن ناهمخواناند؛ برای نمونه، احتمال رسیدن به بهترین راهحل در جایی 5 درصد و در شکلها حدود 30 درصد ذکر شده است. نویسندگان چهار راه برای آزمودن آن پیشنهاد میکنند: تکامل دادن ریبورپلیزومهای کمینه در آزمایشگاه، جستوجوی ردپای آنها در RNA ریبوزومی، بررسی اینکه ترجمهٔ تکمولکولی در برابر متقلبها مقاوم است، و بازسازی میانجیهای پیشبینیشده. به نوشتهٔ آنها، ریبورپلیزوم اصلی احتمالاً از میان رفته است، اما بقایایش شاید در RNA هر یاختهای زنده مانده باشد.